人类的KLK7基因表达,对细胞增殖与凋亡有什么影响?
编辑|胡叁叔
前言人类激肽释放酶7是一种肽类蛋白酶,它能分解多种基质,从而刺激表皮细胞的免疫功能,使表皮细胞产生大量的细胞死亡。
KLK7是KLK家族中最早在人表皮中发现的一种KLK,又称Syn蛋白酶6。初步实验结果表明,KLK7在表皮中高表达,而在其它部位的表达水平相对较低。
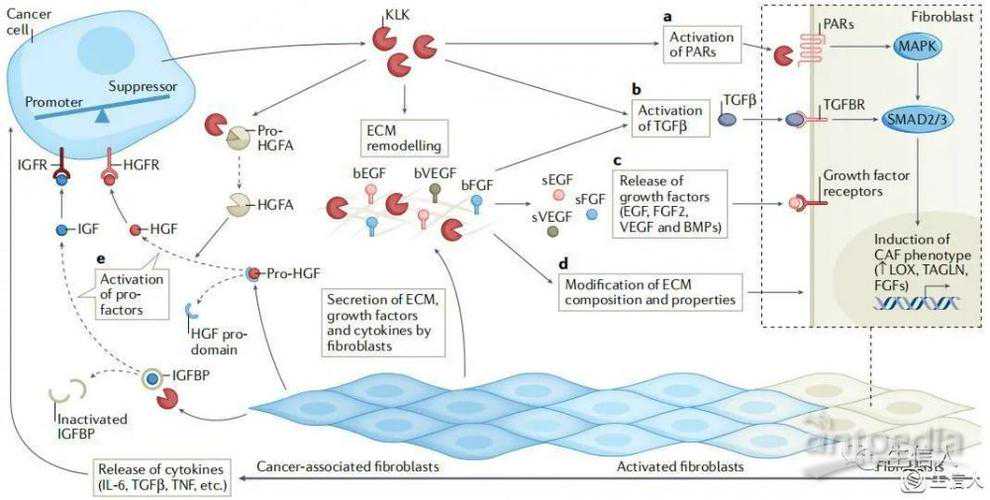
近年来的研究发现,KLK7蛋白在人体内普遍表达,并且与卵巢、乳腺癌、胰腺癌等癌症的生长、侵袭和转移密切相关。
Hansson等人利用基因敲除动物模型,研究了KLK7在皮肤炎性疾病中的作用,并证实了KLK7是一种新皮肤炎性疾病的药物作用靶标。
通过对KLK7基因进行扩增,建立了KLK7基因的重组质粒,在细胞内进行了初步的功能验证。
本项目将进一步阐明KLK7调控KC功能的分子机理,为进一步阐明KLK7调控KC功能的分子机理奠定基础。
将HaCaT细胞从液态氮气中提取后,在DMEM中添加10%的母牛血清,并将其保存在南岳山区湖南省重点实验室。
从阿西根公司购买的质粒萃取用具;一株GSTTagMouse单克隆抗体及二株Goat-抗体-mouselgG(H+L)从武汉三鹰公司购得。
蛋白质标记从Thermo公司购得;北京索莱宝技术公司采购了卡那霉素和氨苄青霉素,以及其他常用的化学药品;PVDF薄膜可从米利波尔公司获得。
本研究以湖南省在南岳山区建立的PMD19TKLK7为研究对象,应用Water公司设计的PMD19TKLK7引物(图1),应用KODFXNeoHighPCR技术对其进行了PCR检测。
PCR的反应系统按说明书上的步骤:在95度4分钟的预变性、98度10秒的变性,68度30秒的退火,68度50秒的延长,循环35个周期。
本项目拟以pGEX4T1-KLK7为研究对象,以BamHI、XhoI等为切入点,利用LigationMix技术将其与Transetta(DE3)蛋白共价结合。
Transet(DE)敏感型细胞利用RNA-seq技术,获得耐药性阳性克隆,并利用GenBank网站及DNASTARMegAlign软件进行验证。
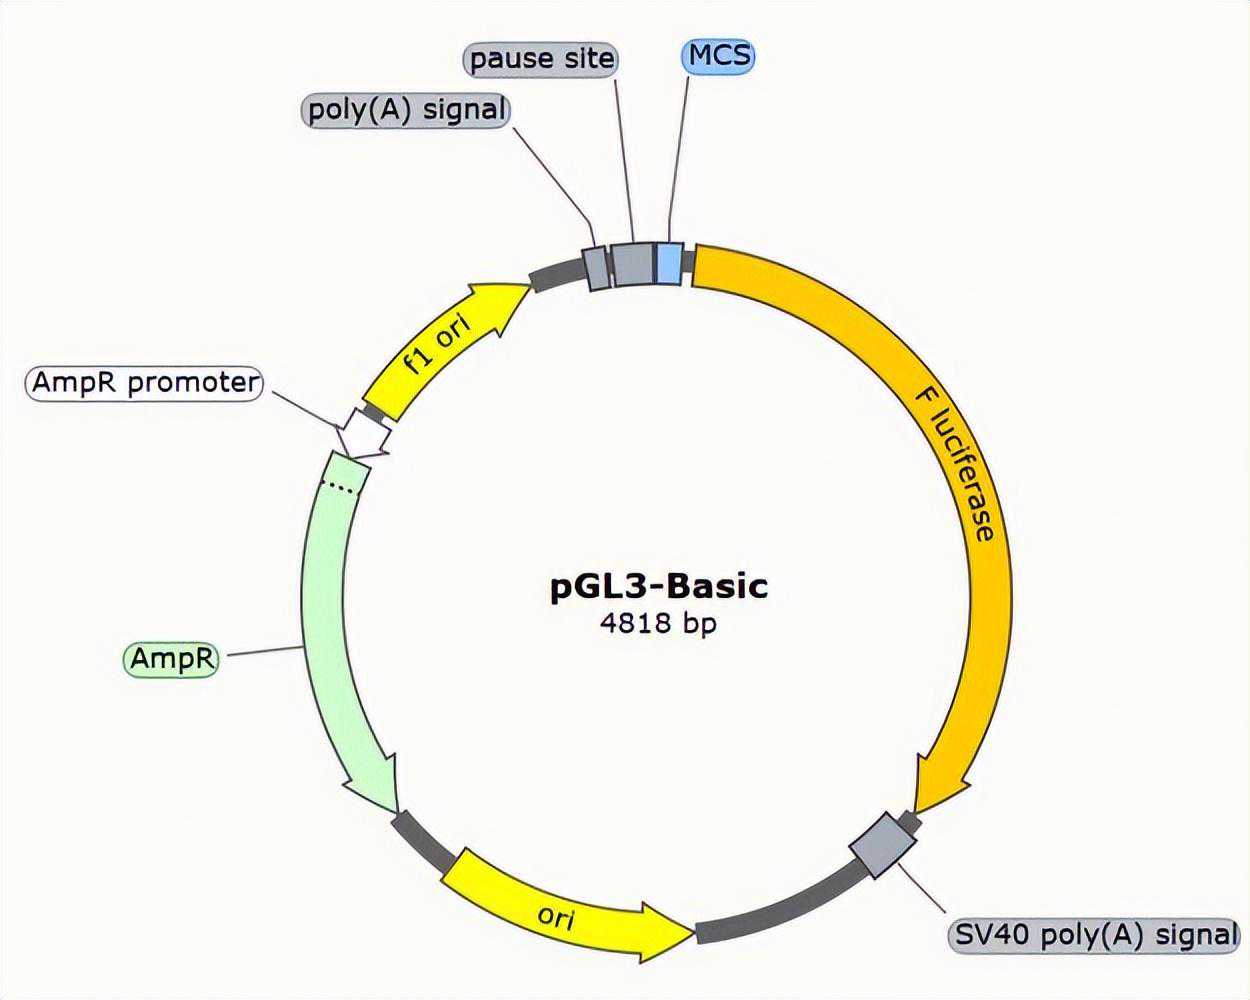
用BglII、BamHI对pEGFP-C1基因进行双酶切;采用T4DNA连接酶,将该基因和该载体进行一晚上的转染,在LB固态培养液中,最终浓度为100ngmL-1。
将单株分离的细菌,置于含有卡那霉素的LB型液体培养基上,采用与1.2.2相同的方式,通过基因测序比较,获得了pEGFP-C1-KLK7的重组基因。
将SDS中的蛋白质转移至PVDF薄膜进行Westernblot,用2%的脱脂牛奶在37℃下密封1小时,PBST冲洗3次。
一抗性GSTTagMouseMcAb(1:5000)孵化1小时,二抗Goat-Anti-mouselgG(H+L)孵化3小时,用DAB显色试剂盒对PBST进行显色。
将生长状况良好的HaCaT细胞种植到96孔细胞培养板中,并将其置于37℃,5%CO2培养箱中进行培养。
当其汇合率达到80%时,使用Xfect试剂盒转染技术,将重组真核表达载体pEGFP-C1-KLK7、pEGFP-C1转染到HaCaT细胞中。
采用Xfect技术将重组基因pEGFP-C1-KLK7和空载体pEGFP-C1转染成HaCaT细胞,以未转染的HaCaT细胞为空载体,以3组细胞为对照组。
在细胞内添加10µL/孔CCK-8溶液,以450nm波长下的OD为切入点,采用IBMSPSSStatistics23进行关联分析,以明确KLK7在HaCaT细胞中的作用。
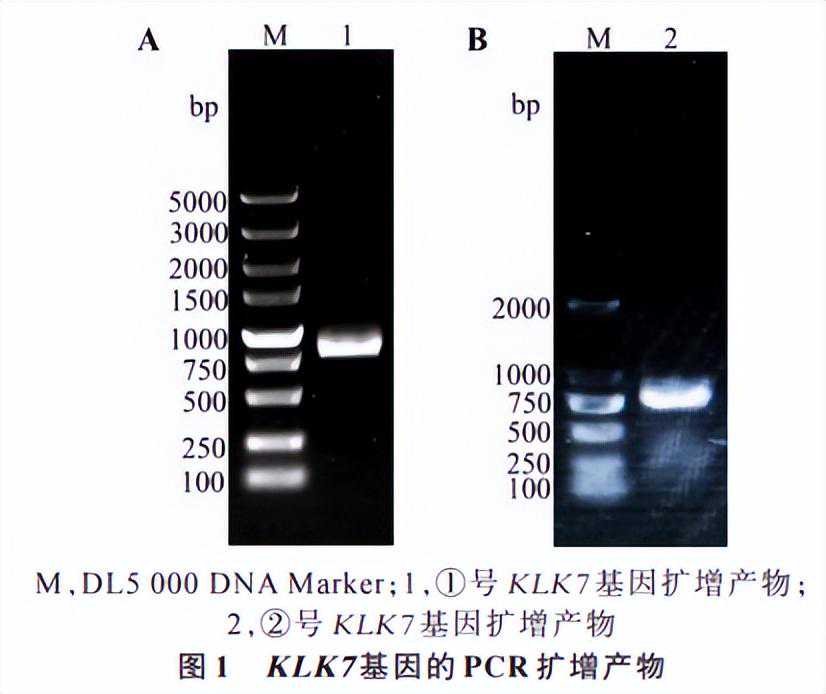
以cDNA作为模板,利用KLK7-F1-BamHI和KLK7-R762-XhoI作为PCR扩增的引物,通过1.2%的琼脂糖凝胶电泳。
最终获得一段分子量在760bp左右(在图1中的第1泳道中)的一段DNA,用以建立下游的原核表达载体。
在同一模板上,利用hKLK7-F1-BglII及hKLK7-R762-BamHI对上述两个引物进行了扩增,获得了一段分子量在760bp左右的核酸段,供后续的真核表达载体构建之用。
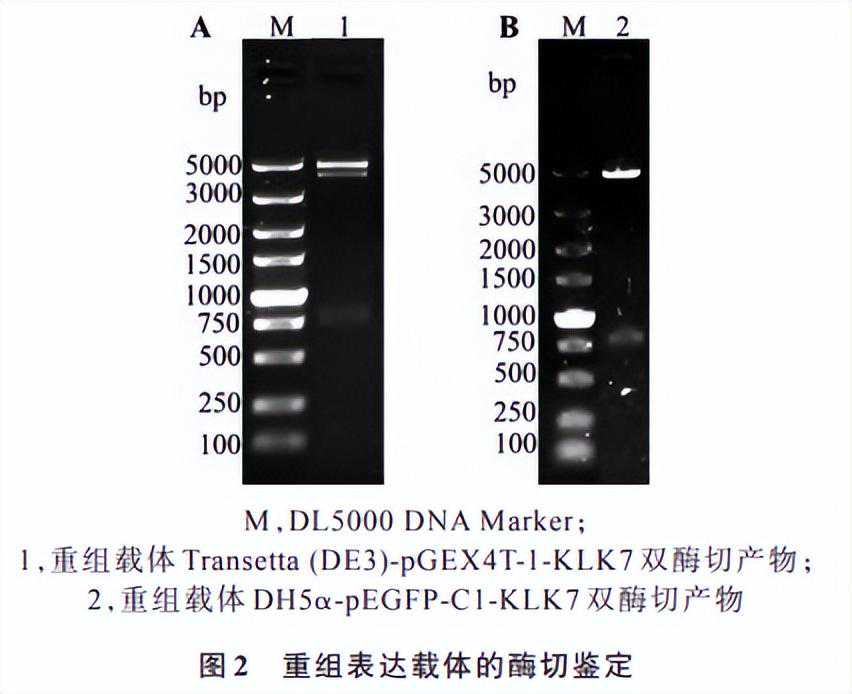
用BamHI(DE3)-pGEX4T-1-KLK7进行双酶解,获得了相对分子质量为760bp、4900bp的目标条带,说明目标基因已被顺利地克隆入pGEX4T-1载体(图2-A)。
KLK7的诱导表达Transetta(DE3)-pGEX4T-1-KLK7阳性菌株诱导后,SDS-PAGE电泳进行分析。
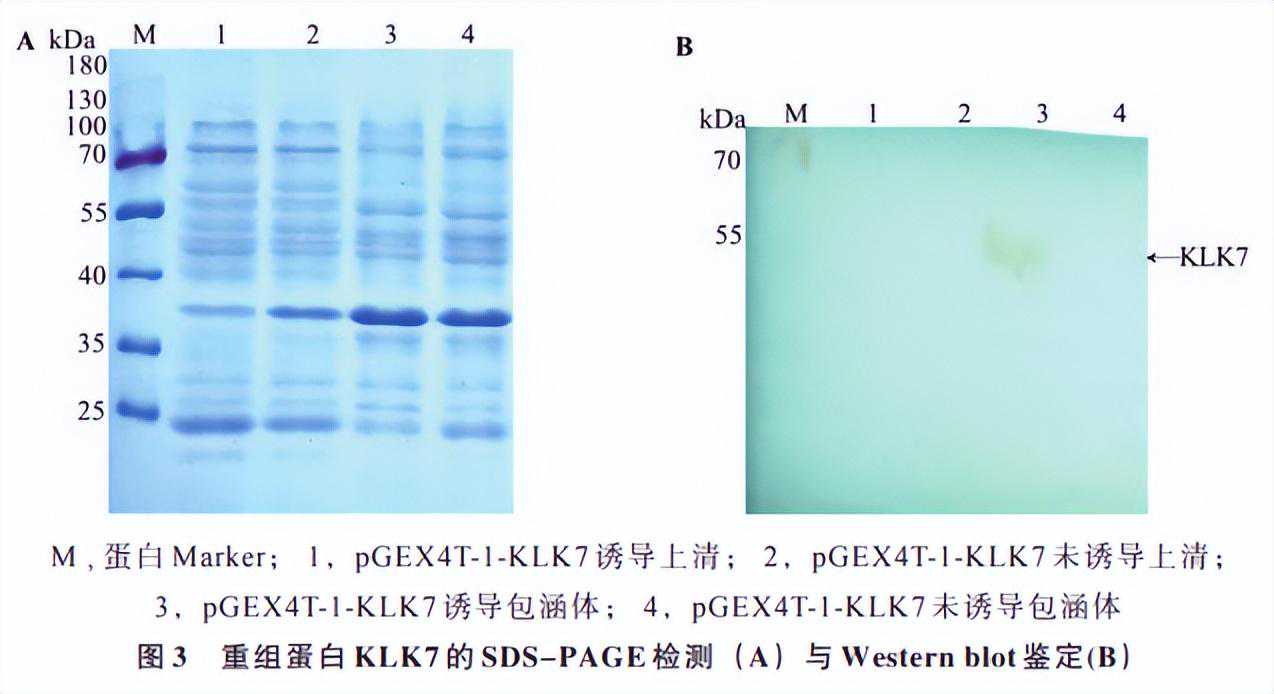
目标蛋白pGEX4T-1-KLK7在上清和包涵体中没有看到显著的目标条带(图3-A),但是Westernblot分析发现,pGEX4T-1-KLK7包涵体蛋白在53.5kDa处有一条目标条带(图3-B),这表明重组KLK7已经成功地进行了表达。
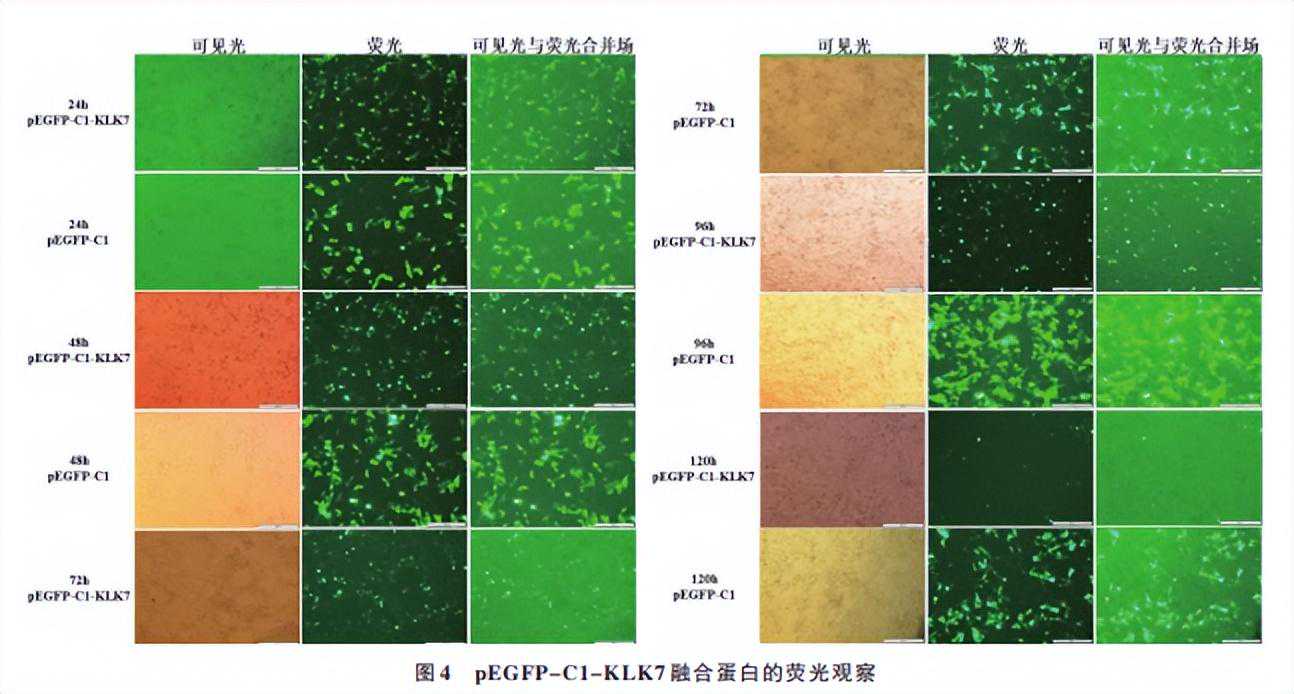
从图4中的绿色萤光可以看到,在转染pEGFP-C1-KLK7的HaCaT细胞中,绿色萤光分布于细胞浆中,并且在培养的最后阶段(在转染72h之后),大多数发光的细胞开始变圆、脱落、死亡。
前期研究发现,pEGFP-C1可诱导HaCaT细胞发生明显的荧光,并随时间延长而增强,细胞仍维持了类似上皮样的结构。
以上结果表明,KLK7在HaCaT细胞中高表达,可显著抑制其增殖。
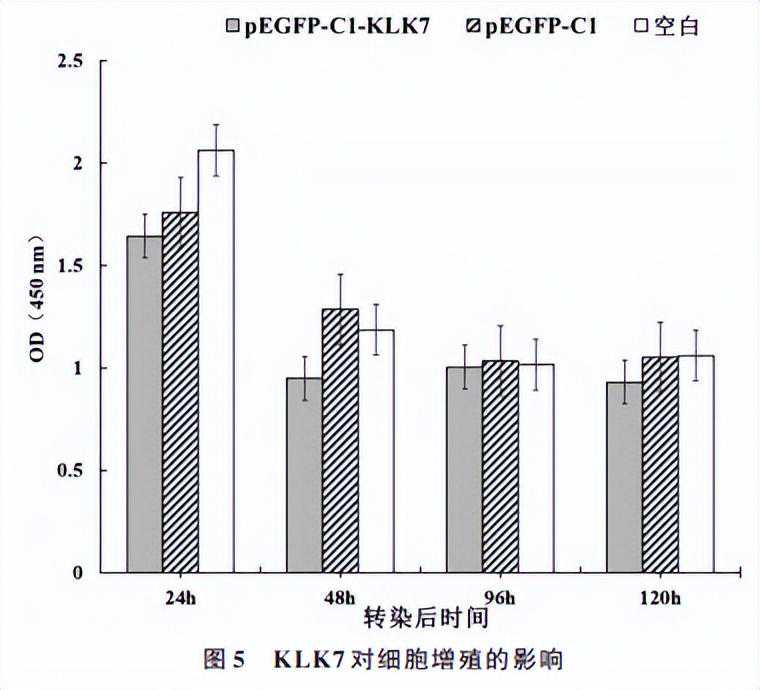
转染pEGFP-C1-KLK7、pEGFP-C1及空腹HaCaT细胞24h内OD值降低,其中以转染pEGFP-C1-KLK7组OD值为最小,24h内差异最大。
KLK7在HaCaT细胞中的高表达,可在某种程度上抑制其生长(),但无统计学意义()(图5)。
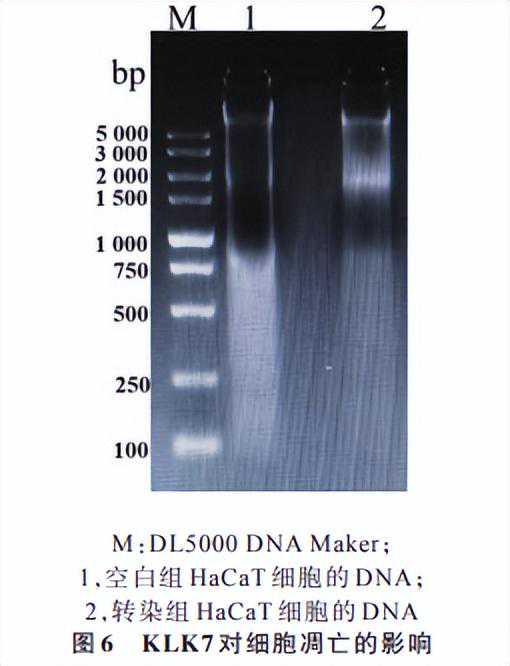
在转染后72h样本DNA电泳的结果表明,从DNA电泳的带型来看,KLK7蛋白表达组的细胞与对照有显著不同(图6)。
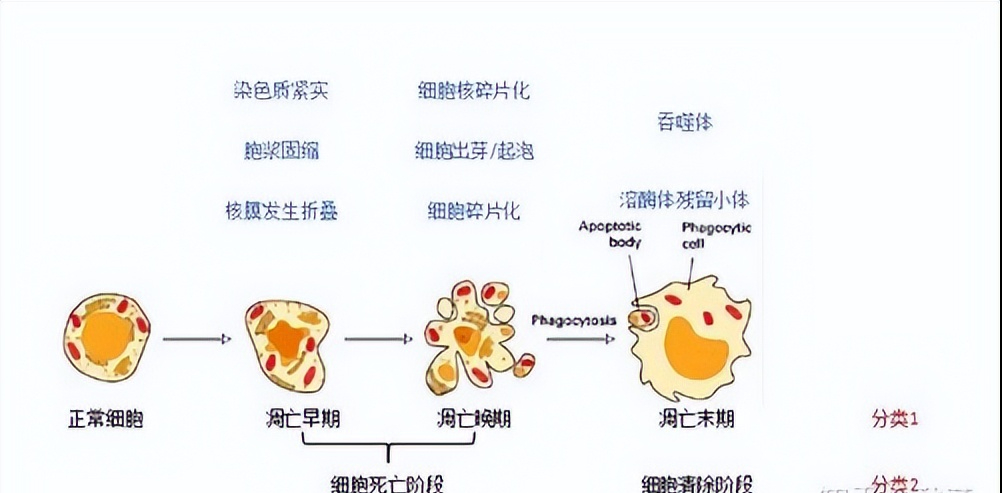
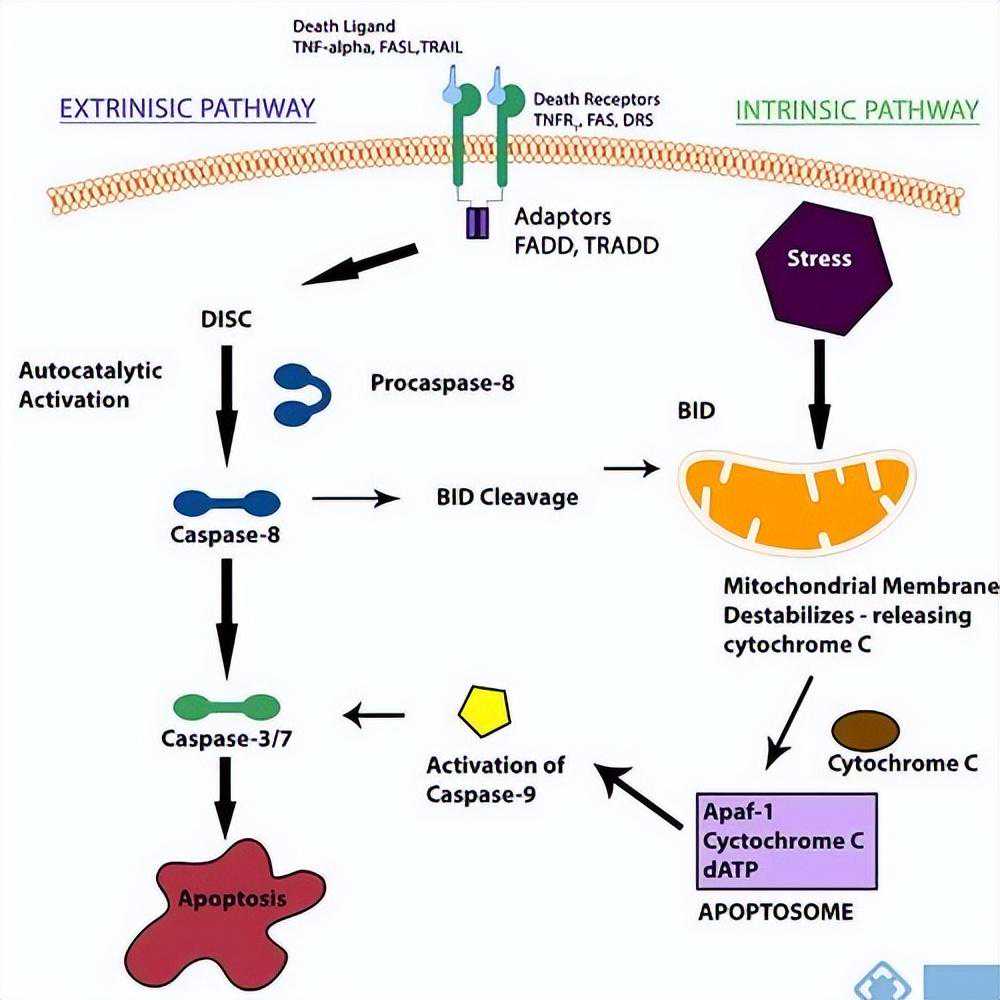
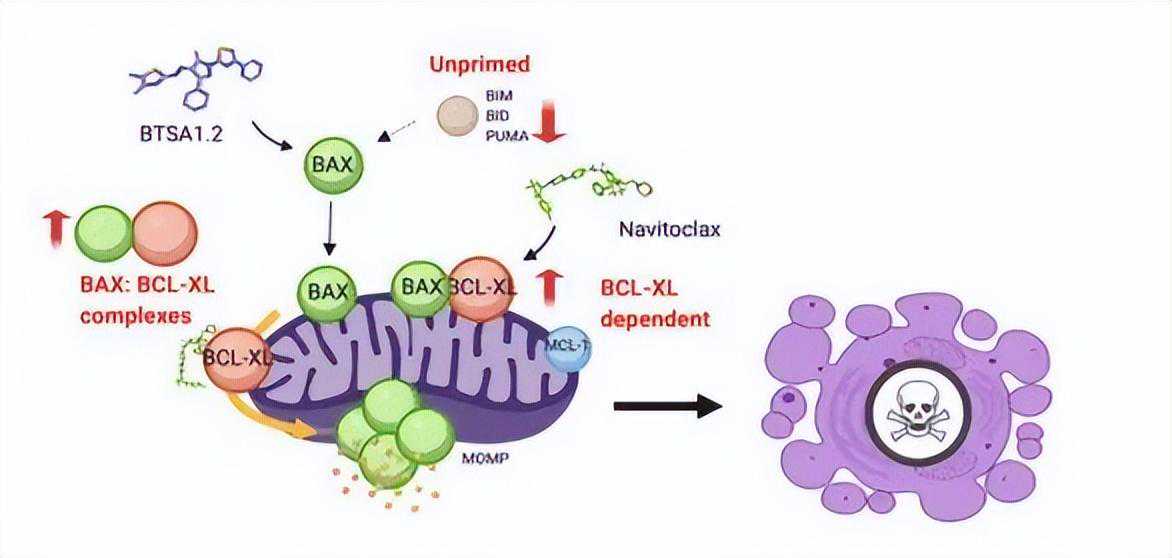
这说明KLK7蛋白表达可促进HaCaT细胞的凋亡,但是DNA凋亡ladder还不完全典型,这说明还没有到凋亡后期。
利用原核表达体系,将蛋白质分为两种不同的方式,即内含体态和溶解态。通过对KLK7基因的原位表达,发现该基因仅在包涵体中表达,不能溶解。
黄逢雨等人通过pET21a获得了一种具有较好免疫原性的KLK7蛋白,并以包涵体的方式进行了表达。
为了提高重组蛋白可溶性的表达,可以增加重组蛋白的接种数量,或者利用带有冷激启动子的载体,在低温下进行低温诱导,降低蛋白合成速率,实现可溶性蛋白的表达。
前期研究发现,KLK7可显著增强肿瘤细胞的生长能力,且其表达下调可显著降低PANC-1细胞的生长能力。
在胞浆内KLK7有较强的分布,这一点与陈康等人的实验结果相吻合,提示其可能在胞浆内起着重要的作用。
同时,KLK7在HaCaT上的高表达可显著降低HaCaT增殖能力。在24小时内,KLK7基因的表达率最高,与正常细胞相比,差异最大。
在转染后期,各组之间OD值的差异变得越来越小,这有可能是因为在转染后期,转染pEGFP-C1-KLK7的细胞已经有了大量的死亡(图4)。
为此,本项目拟进一步提升KLK7基因的转染率,使KLK7基因与正常对照相比。
荧光显微镜下显示,经EGFP-C1-KLK7基因过表达的细胞数量明显减少,且荧光强度明显减弱,显示出EGFP-C1-KLK7基因在细胞存活过程中具有一定的抑制效应。
在空质粒上,pEGFP-C1基因转染后,其荧光强度逐渐增强,这表明EGFP基因的转染并不会对其活性产生影响。
通过对KLK7基因敲除小鼠的研究发现:KLK7基因在肿瘤发生中,起到了重要的调控作用。
因此,我们提出假说:KLK7在AD发病中发挥重要作用,但其在AD发病中的作用尚不明确。
KLK7基因在HaCaT细胞中的高表达,能够有效地抑制HaCaT细胞的生长,并能诱导其凋亡。
参考文献:
[1]黄逢雨,莫曾南《hK7多克隆抗体的制备及其在前列腺中的初步应用》
[2]李秋凤,陈静,赵婧邑,等《D-阿洛酮糖3-差向异构酶在大肠杆菌内的高效可溶性表达及发酵条件研究》
[3]陈康《KLK7在原发性肝细胞肝癌中的表达及其意义》
[4]汪宇《基于特应性皮炎发病核心环节:角质形成细胞的小分子药物的思考》