β-葡萄糖苷酶Cs BGlu12的功能表征及其在非生物胁迫中的作用
编辑|杪夏的光
前言糖基化和去糖基化是植物调节多种次生代谢物生物活性的引人注目机制。尽管糖基化提高了溶解性并使代谢物适于运输和隔离,但去糖基化则激活它们以执行生物功能。在这里报道了来自藏红花的β-葡萄糖苷酶CsBGlu12的功能表征。
CsBGlu12具有典型的葡萄糖苷水解酶1家族(α/β)8三磷酸异构酶(TIM)桶状结构,具有高度保守的活性位点。体外实验证明,CsBGlu12能催化黄酮醇β-葡萄糖苷和纤维素寡糖的水解。对活性位点两个保守催化谷氨酸残基(Glu200和Glu414)之一进行位点特异性突变会完全消除β-葡萄糖苷酶活性。
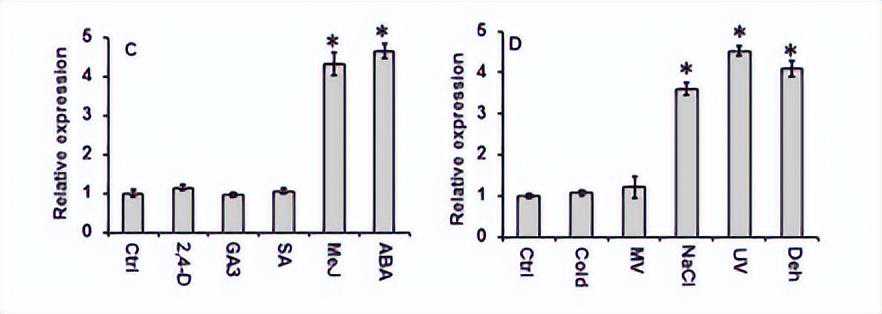
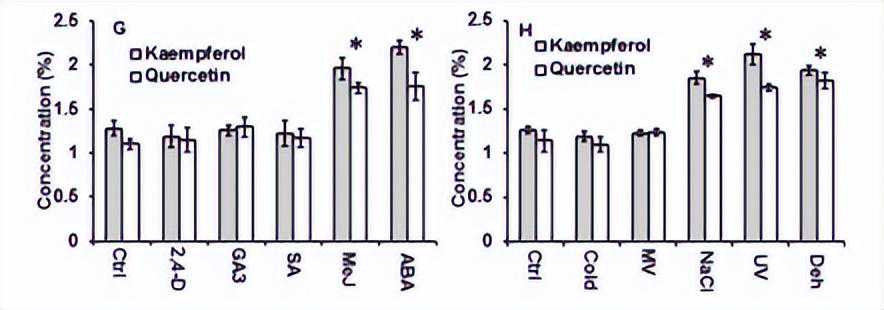
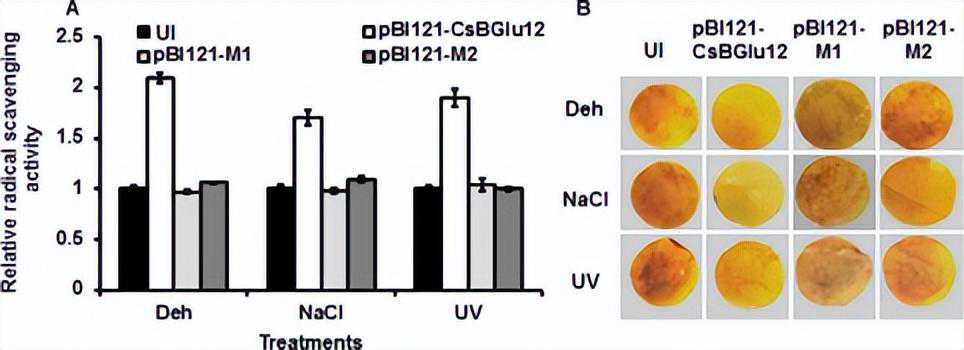
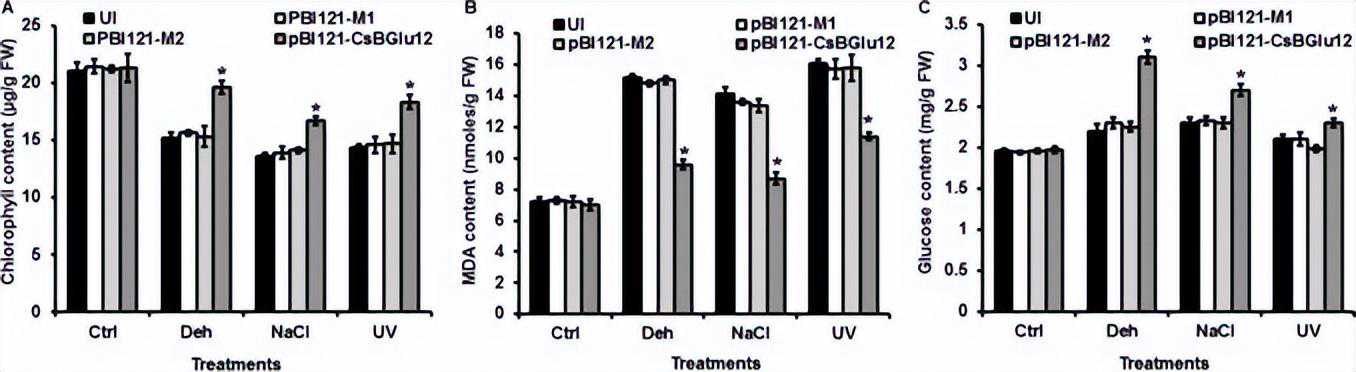
转录分析显示,Csbglu12在UV-B辐射、脱水、NaCl、甲基茉莉酸酯和脱落酸处理下显著诱导,表明其可能在植物应对胁迫的过程中发挥作用。CsBGlu12的瞬时过表达导致抗氧化剂类黄酮在内的积累,并赋予植物耐受非生物胁迫的能力。抗氧化活性分析表明,在非生物胁迫条件下,黄酮醇的积累减轻了活性氧化物种的积累。
β-葡萄糖苷酶在非生物胁迫,尤其是脱水通过脱落酸的作用中发挥一定的作用;,它们通过积累活性氧化物种(ROS)清除的黄酮醇来发挥作用的机制尚未确立。目前只有一个β-葡萄糖苷酶12同源物进行了功能表征。研究对CsBGlu12的表征及其在非生物胁迫中通过清除ROS的作用具有重要意义。
植物是不能逃离捕食者和恶劣环境条件的固着生物。在进化过程中,植物通过合成各种次生代谢物学会了自我防御和适应不同类型的生物和非生物胁迫。其中许多次生代谢物以非活性的糖基化形式储存。糖基化在化学上稳定并增强了代谢物的溶解性,使其适合储存在液泡中,并更能保护植物免受其自身防御系统的有害影响。
这些糖结合物通过一类名为β-葡萄糖苷酶的酶水解β-葡萄糖苷键而被激活。β-葡萄糖苷酶()属于糖苷水解酶1家族,它们在植物中执行多种重要功能,包括但不限于激活木质素前体,从寡糖中释放葡萄糖,从非活性糖苷中释放植物激素,以及激活多种防御化合物。
这种糖基化和去糖基化的过程提供了一种有效的机制,调节次生代谢物的稳态,并不仅限于植物,而是扩展到其他领域,如古菌、真细菌和动物。β-葡萄糖苷酶的亚细胞定位、底物特异性以及与生理底物接触的条件决定了它们的生物学作用,并且仍然是一个研究的热点领域。
深入了解植物如何在发育和环境刺激下调节β-葡萄糖苷酶家族的个体成员以及释放的代谢物如何调节植物的生理反应非常重要。藏红花(CrocussativusL.,鸢尾科)是一种无性三倍体植物,通过营养繁殖。藏红花的干燥柱头形成商业上的藏红花。
到目前为止,仅有一个与藏红花β-葡萄糖苷酶相似的水稻酶(Os4Bglu12)已被鉴定为植物葡萄糖苷水解酶1家族的成员,并且仅有少数其他酶的功能得到了表征。尽管已经报道了少数这些鉴定的β-葡萄糖苷酶在非生物胁迫中通过脱落酸积累发挥作用,但首次报道了来自藏红花的β-葡萄糖苷酶CsBGlu12通过积累清除ROS的黄酮醇而在非生物胁迫耐受中的作用。
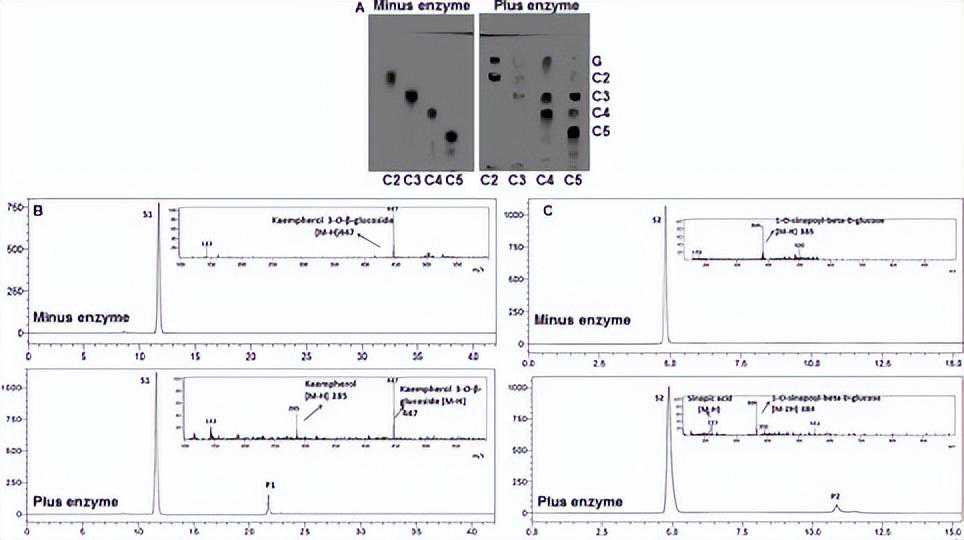
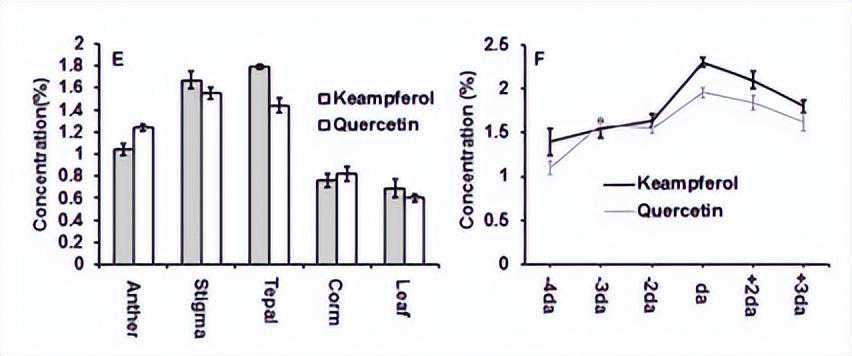
CsBGlu12具有典型的糖苷水解酶1家族的(α/β)8三磷酸异构酶(TIM)桶状构象。该基因在花部组织中表达较高,并以发育特异的方式调控。纯化的重组酶能够在体外催化纤维素寡糖和黄酮醇β-葡萄糖苷的水解。
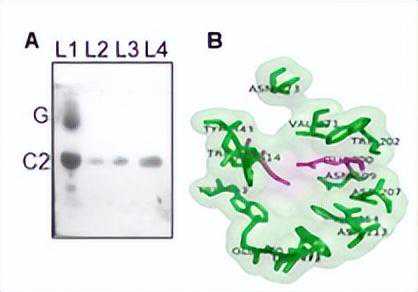
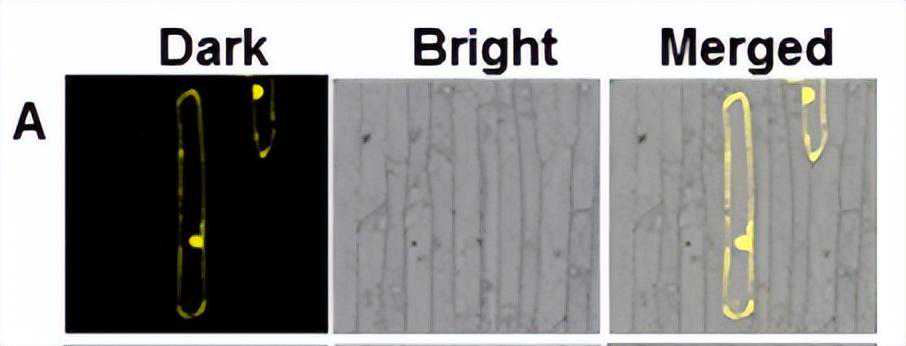
突变任何一个催化谷氨酸残基都会完全废除CsBGlu12的活性。Csbglu12的转录在多种非生物胁迫刺激下得到显著诱导。将CsBGlu12短暂过表达于秋海棠烟草中,会导致抗氧化剂类黄酮的积累,从而通过清除ROS增加对紫外线-B、盐度和脱水胁迫的耐受性。
实验室之前从藏红花的柱头和花部组织中建立了一个转录组数据库。从该数据库中筛选出的15个序列与植物β-葡萄糖苷酶显示出同源性。其中一个序列(comp32077_c0_seq1)在柱头中表达较高,柱头是藏红花中黄酮类物质合成的主要部位。
根据其表达情况,克隆了全长基因,该基因长度为1524个碱基,编码507个氨基酸。预测的蛋白质分子质量为57.31千道尔顿。推测的等电点(pI)和消光系数分别为7.6和108,430m−1cm−1。
为了了解CsBGlu12与其他植物的β-葡萄糖苷酶正交同源物之间的进化关系,进行了系统发育分析。CsBGlu12与侧穗草、早熟禾和水稻的β-葡萄糖苷酶显示出高度的序列相似性。此CsBGlu12和其他用于系统发育分析的β-葡萄糖苷酶根据一子叶植物和二子叶植物的分类而发生分歧(补充图S1)。
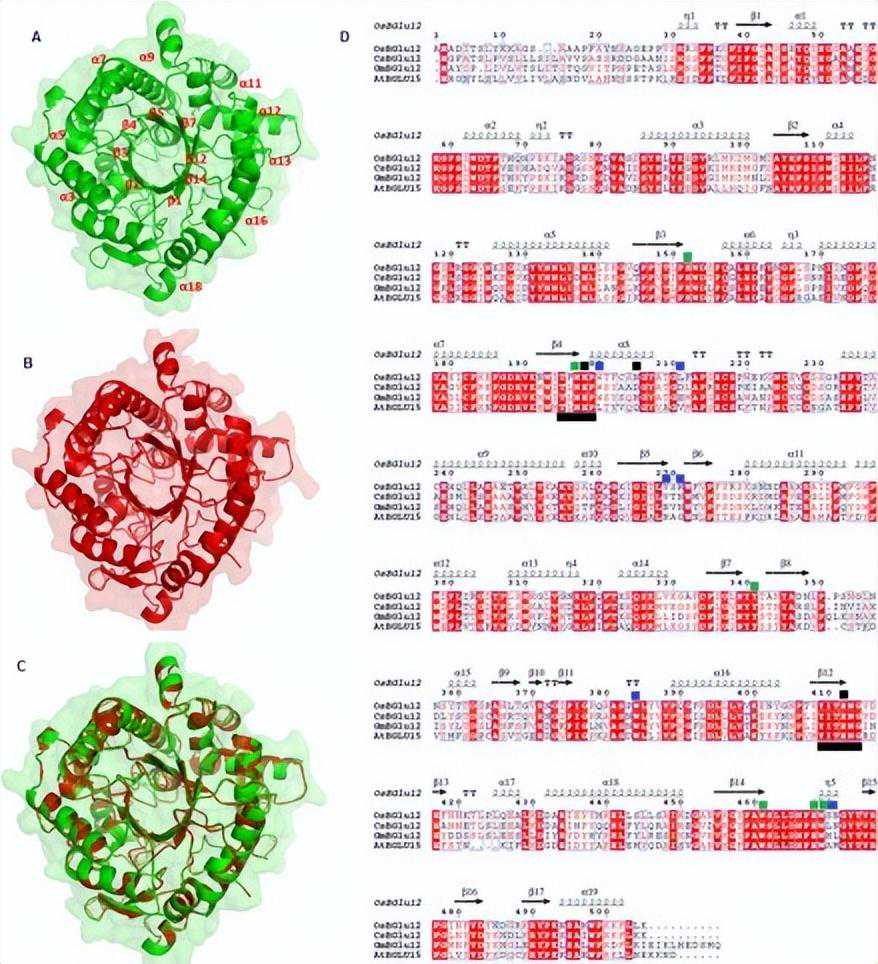
为了了解CsBGlu12的结构,使用SWISS-MODEL软件以水稻Os4Bglu12为模板构建了一个三维同源模型。结果表明CsBGlu12具有典型的(β/α)8三磷酸异构酶(TIM)桶状构象。
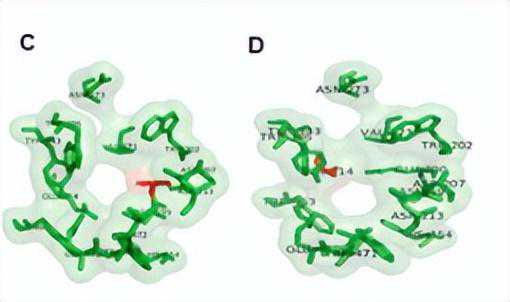
CsBGlu12的活性位点由在进化上保守的氨基酸残基(His154、Asn199、Tyr343、Trp463、Glu470、Trp202和Asp207)组成,这些残基表明它是一个活性的β-葡萄糖苷酶,并且由非保守的脱糖基结合残基(Trp202、Asp207、Asp213、Val271、Ser281、Trp386和Leu472)负责植物β-葡萄糖苷酶的底物特异性。
催化残基包括两个高度保守的谷氨酸残基Glu200和Glu414,它们位于CsBGlu12的特征和保守的肽段基序Thr-(Phe/Leu)-Asn-Glu-Pro(T(F/L)NEP)和Tyr-Ile-Thr-Glu-Asn-Gly(YITENG)中(图1)。这些特征是GH1家族β-葡萄糖苷酶的许多其他成员的特点,这些残基被认为对β-葡萄糖苷酶的活性至关重要。
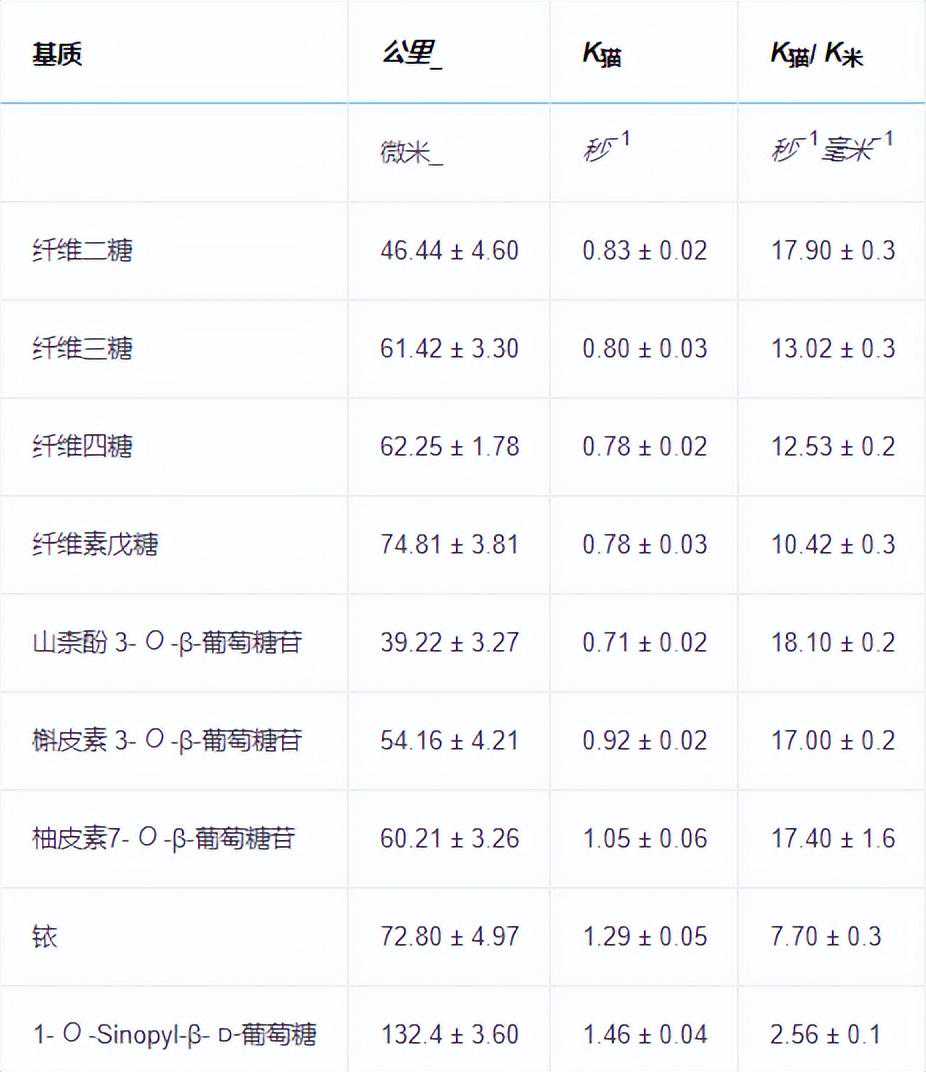
对一系列底物进行的对接研究显示,CsBGlu12对纤维素寡糖和黄酮类3-O-β-葡萄糖苷具有较高的特异性,对酚类β-葡萄糖苷具有中等的亲和力,对香豆素和其他葡萄糖苷的亲和力较低。作为代表性底物,酶-配体复合物的最佳姿态的自由能变化(ΔG)分别为-8.71和-7.62kcal/mol,对应于纤维二糖和山柰酚3-O-β-葡萄糖苷;而分子间能量分别为-7.01和-6.20kcal/mol。
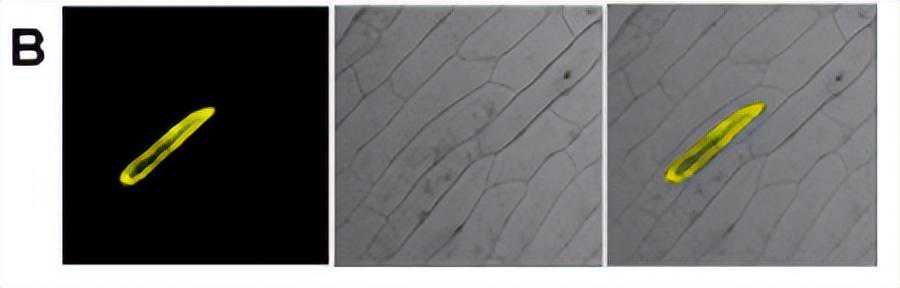
对于1-O-香豆素基-β-D-葡萄糖,自由能变化和分子间能量分别为-3.11和-2.7kcal/mol。CsBGlu12对香豆素和其他葡萄糖苷的自由能变化较低。
与CsBGlu12相互作用的残基包括His154、Trp155、Asp156、Asn199、Glu200、Trp202、Tyr204、Ala215、Asp207、Asp213、Val2671、Asn273、Ser279、Met295、Tyr343、Trp386、Leu387、Thr413、Glu414、Leu472、Glu470和Trp471(附图S2)。用于对接分析的底物列表及其自由能变化详见附表S1。
为了进行异源表达,Csbglu12的全长cDNA被克隆到pGEX-4T-1载体中,并以N端GST融合蛋白的形式在大肠杆菌中表达。在30°C下,通过在感应后0到8小时的不同时间间隔内进行表达,确定了蛋白表达的最佳条件。结果显示,在30°C下,通过1mmIPTG诱导6小时后,蛋白的最大表达量观察到。重组酶显示出约57kDa的表观分子质量。
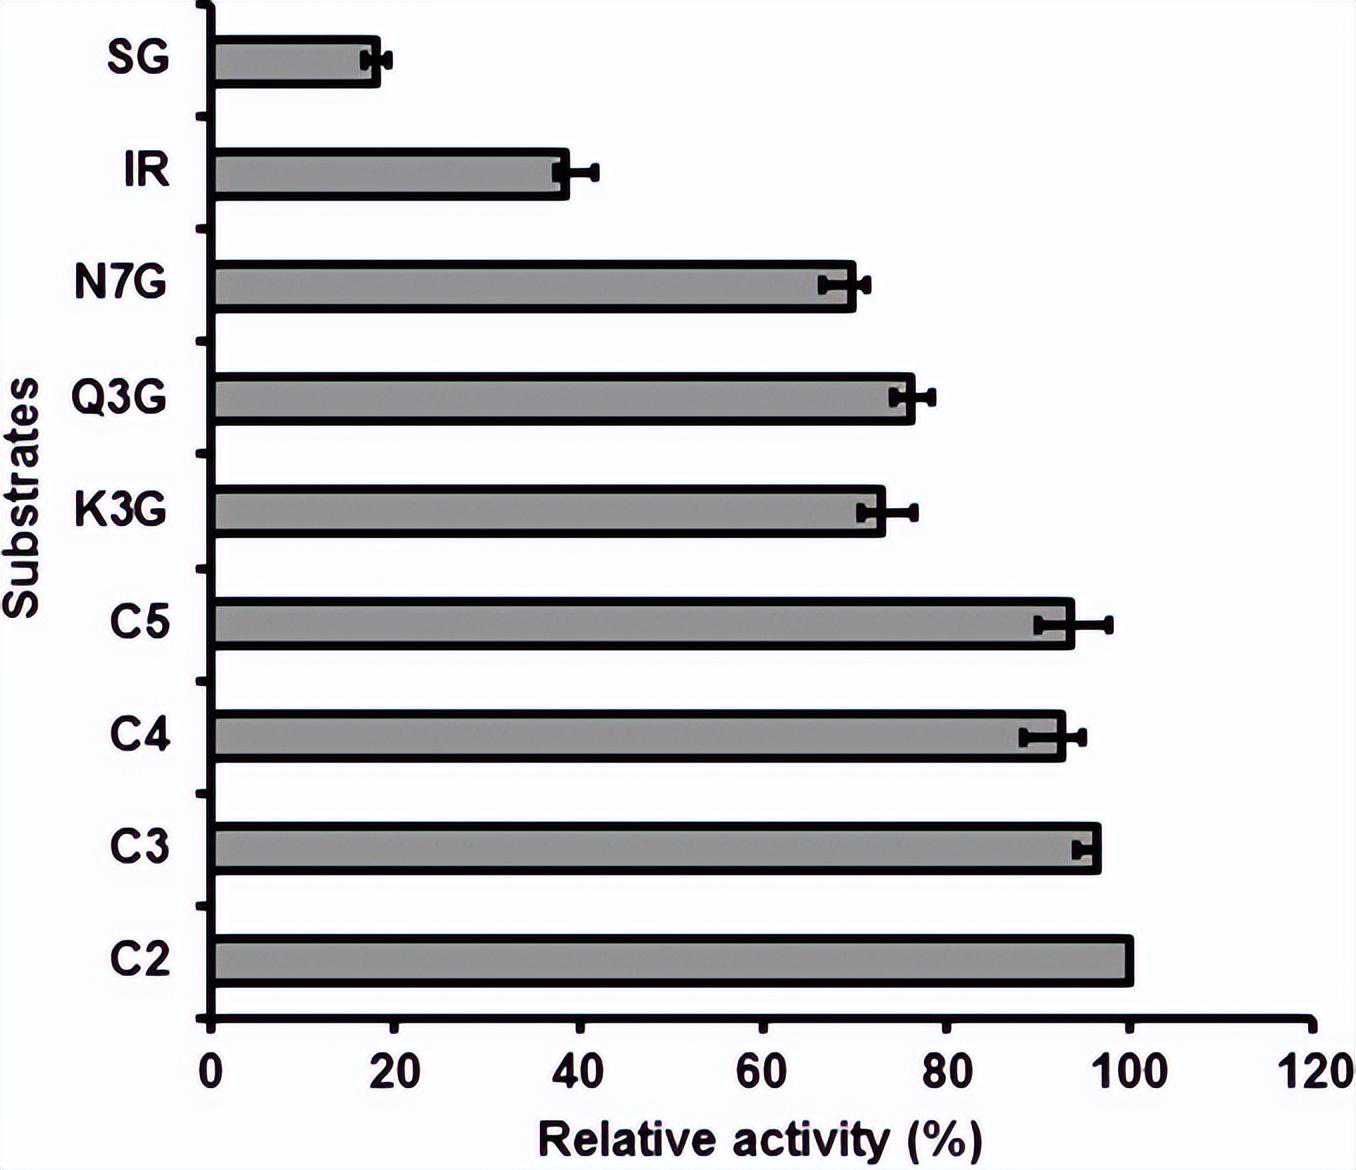
为了确认其特异性,利用基于对接分析选择的底物确定了重组CsBGlu12酶的β-葡萄糖苷酶活性。相对活性以对纤维二糖的酶活性为100%进行了测定(图2)。CsBGlu12对纤维二糖、黄酮类和酚类β-葡萄糖苷显示出活性;在对香豆素和其他葡萄糖苷进行测试时,未观察到明显的CsBGlu12活性
在广泛的pH范围内进行的水解活性比较显示,重组CsBGlu12在时具有最佳活性(附图S4)。pH最适宜点是其他植物β-葡萄糖苷酶的特点。还评估了多种添加剂对重组CsBGlu12体外酶活性的影响,其中包括几种金属离子和破乳剂。
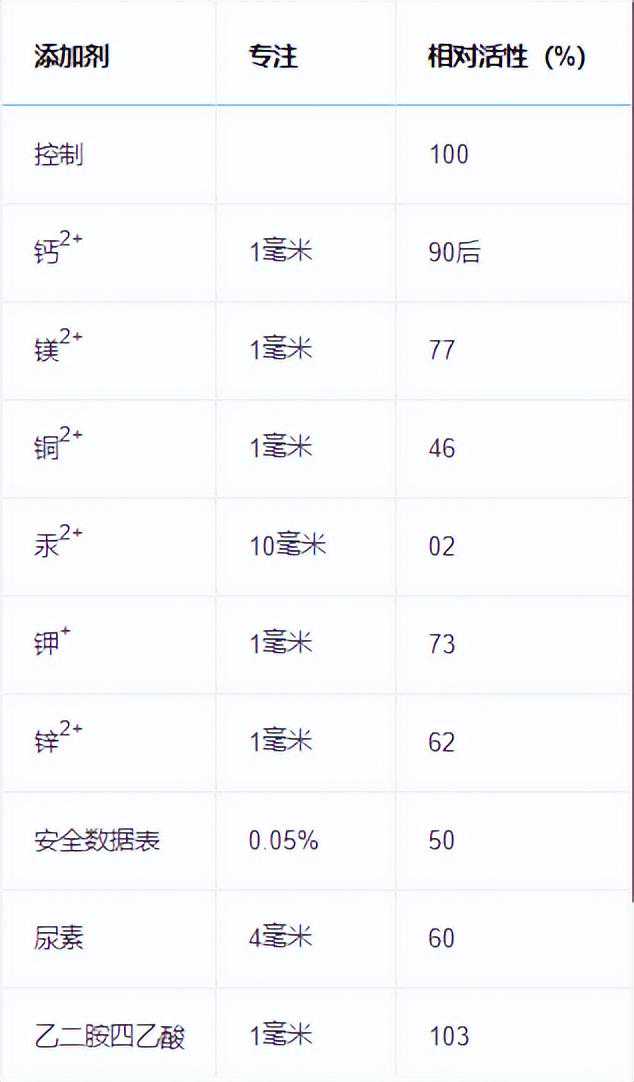
大多数金属离子使酶的活性降低了10-98%(表2)。Hg2+(10mm)引起的抑制最强,其次是Cu2+(1mm),而Ca2+对体外酶活性的抑制作用最小。与金属离子相比,重组酶对破乳剂的影响较小。
在存在SDS(0.05%)和尿素(4mm)的情况下,酶活性分别被抑制了50%和60%。EDTA(1mm)、非离子洗涤剂TritonX-100(1%)和还原剂2-巯基乙醇(1%)对酶活性几乎没有影响。这些观察结果与之前进行的研究结果一致。
Csbglu12在花蕊的柱头中表达较高,而花蕊是番红花中许多次生代谢产物(包括黄酮和类胡萝卜素)生物合成和积累的主要部位。选择了Csbglu12进行进一步研究。与许多尚未被充分研究的β-葡萄糖苷酶相比,番红花CsBGlu12在系统发生分析中被聚类(附图S1),这使得对其进行研究更加重要。
在CsBGlu12的非常相似的同源物中,只有一个β-葡萄糖苷酶(Os4BGlu12)已被鉴定,但其在植物中的作用尚未确定。
这些研究将有助于更好地理解植物次生代谢物的生物学功能,尤其是番红花。CsBGlu12的研究结果显示它与一些尚未被充分表征的β-葡萄糖苷酶有亲缘关系(附图S1),这使得研究它更为重要。在与CsBGlu12非常接近的同源物中,只有一个β-葡萄糖苷酶(Os4BGlu12)已被鉴定,但其在植物中的作用尚未确定。
随着对植物次生代谢研究的最新进展,逐渐认识到次生代谢物的生物合成、定位和生物活性不仅在转录水平和转录后水平上受到调控,还包括这些代谢物的可逆糖基化,由选择性地糖基转移酶和β-葡萄糖苷酶来完成。
目前,这个领域面临的一个主要挑战是更好地理解植物在不同组织、发育阶段以及对生物和非生物胁迫刺激的响应中如何调控糖基转移酶/β-葡萄糖苷酶家族的各个成员的功能。植物中含有大量的β-葡萄糖苷酶,往往不清楚哪一个负责特定的功能。
β-葡萄糖苷酶及其底物在细胞中分隔存储,只在特定条件下接触。为了评估生物学功能,有必要了解特定β-葡萄糖苷酶的生理底物以及它们接触的条件。在这种背景下,从番红花转录组中鉴定出了15个β-葡萄糖苷酶。
参考文献